Cell Reports | 深圳湾实验室马军团队解析CCHFV聚合酶结构并揭示双位点抑制机制
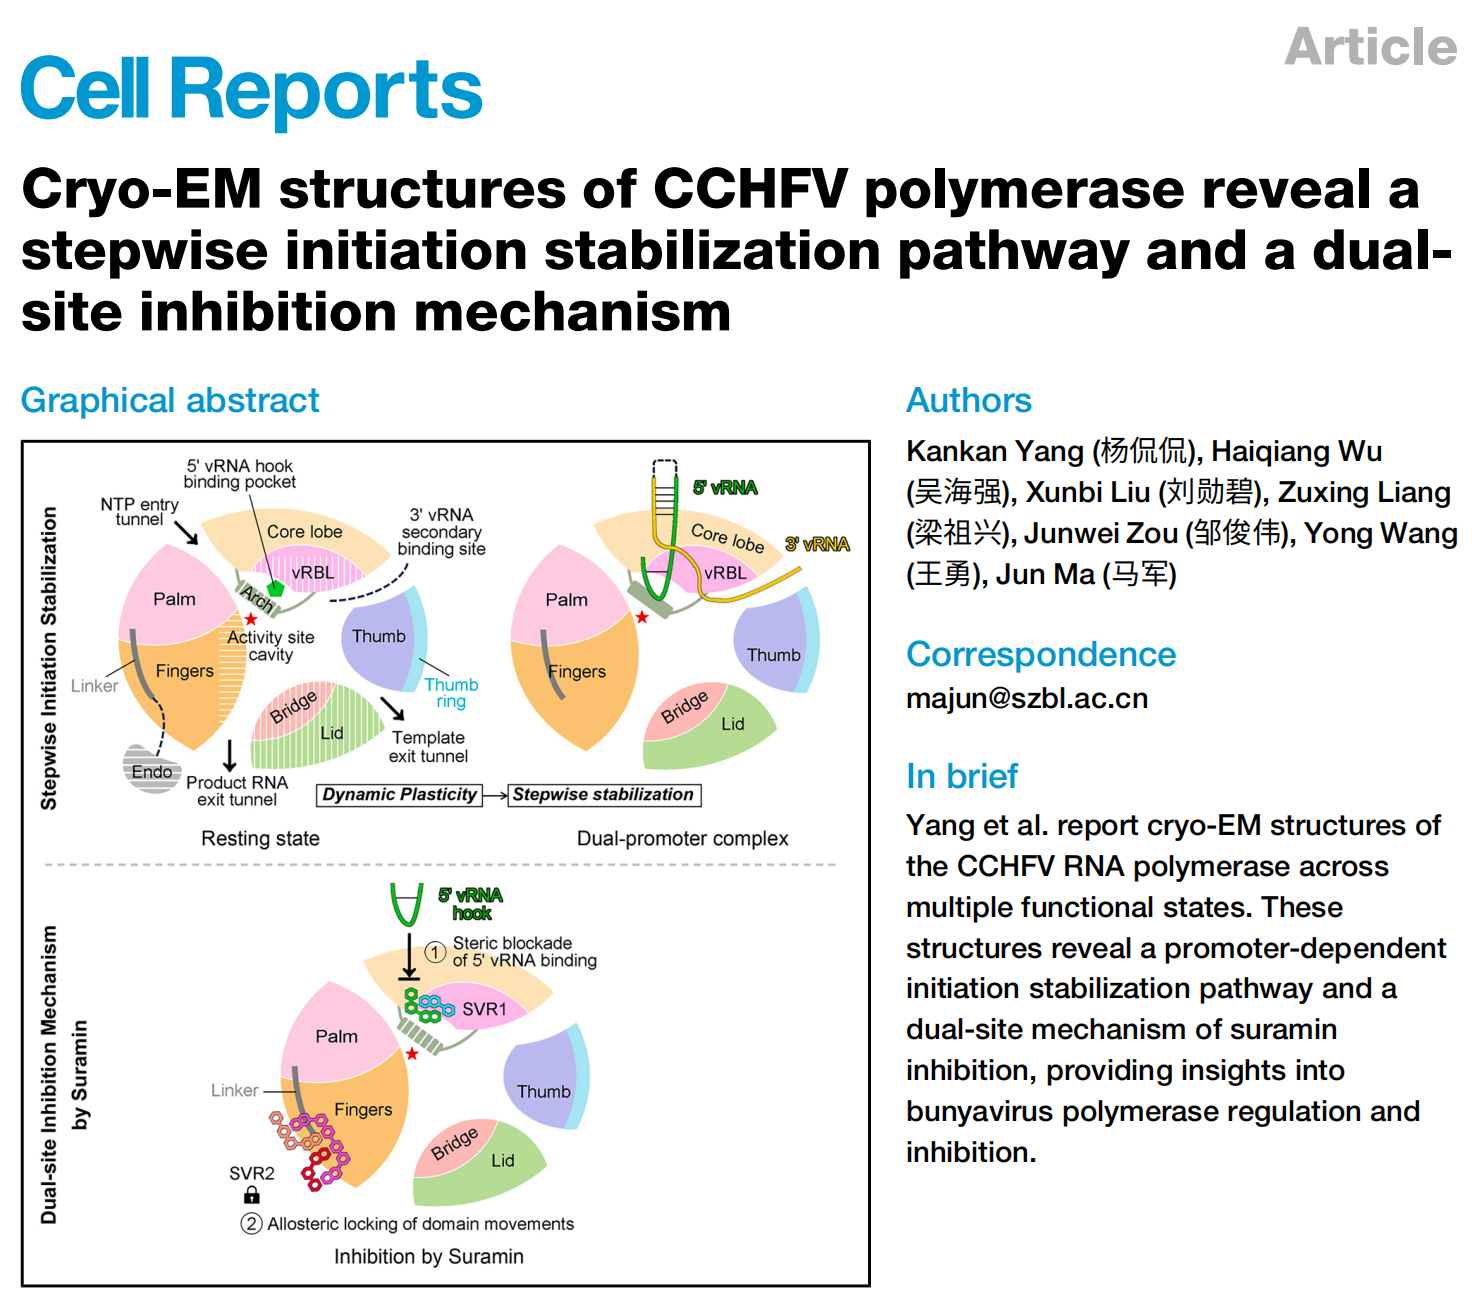
近日,深圳湾实验室传染病研究所马军团队在国际学术期刊Cell Reports上发表了题为 “Cryo-EM structures of CCHFV polymerase reveal a stepwise initiation stabilization pathway and a dual-site inhibition mechanism”的研究论文。该研究利用单颗粒冷冻电镜技术,系统解析了CCHFV RNA依赖性RNA聚合酶(L蛋白)在多个关键功能状态下的高分辨率结构(包括无配体状态、5′ vRNA启动子结合状态、5′/3′ vRNA双启动子复合物状态以及抑制剂结合状态),揭示了病毒基因组启动子识别与聚合酶逐步活化的动态机制,并阐明了小分子抑制剂苏拉明(Suramin)的双位点变构抑制模式。
克里米亚-刚果出血热病毒(Crimean-Congo hemorrhagic fever virus,CCHFV)是一种高致病性病原体,可引起严重的克里米亚-刚果出血热。该病毒主要通过蜱叮咬传播,也可通过接触感染者的血液或体液发生传播。感染者可出现高热、出血及多器官功能损伤等严重症状,病死率较高。由于其具有较强的致病性和传播风险,世界卫生组织(WHO)已将其列为需优先关注和紧急研发防控措施的重点病原体之一。然而,目前临床上尚无获批的特异性抗病毒药物。因此,深入解析其病毒复制机器的结构与作用机制,对于理解病毒复制过程并探索新的抗病毒干预策略具有重要意义。
核心研究亮点
1. 解析CCHFV聚合酶结构,描绘病毒RNA合成机器的基本架构
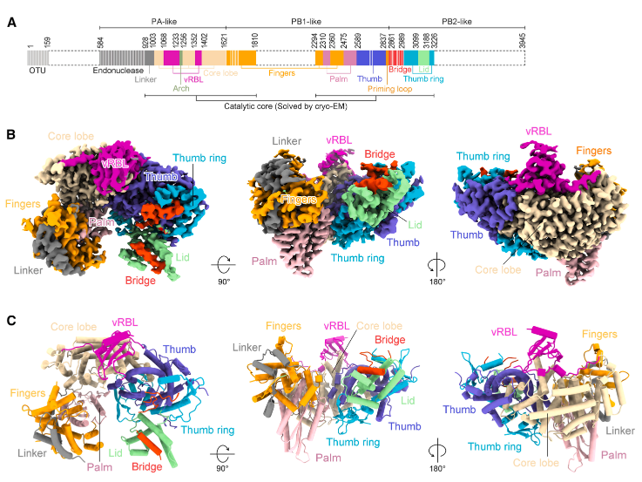
CCHFV L蛋白是病毒复制和转录过程中的核心酶,由3945个氨基酸组成,分子量约450 kDa,是最为复杂的病毒基因组复制机器之一。由于其巨大的分子尺寸和较高的构象柔性,L蛋白的表达、纯化及高分辨率结构解析均面临较大挑战。研究团队利用哺乳动物细胞表达体系成功获得全长CCHFV L蛋白,并建立了稳定的体外RNA聚合酶活性检测体系。在此基础上,研究团队进一步开展冷冻电镜结构解析,获得了多个功能状态下的高分辨率多构象结构。结构分析显示,尽管CCHFV L蛋白具有独特而庞大的辅助区域,其核心聚合酶区域仍保留了布尼亚病毒目RNA依赖性RNA聚合酶高度保守的整体架构及关键催化元件。这些结构为进一步理解CCHFV聚合酶如何识别病毒RNA、招募模板并完成RNA合成提供了重要的结构基础。
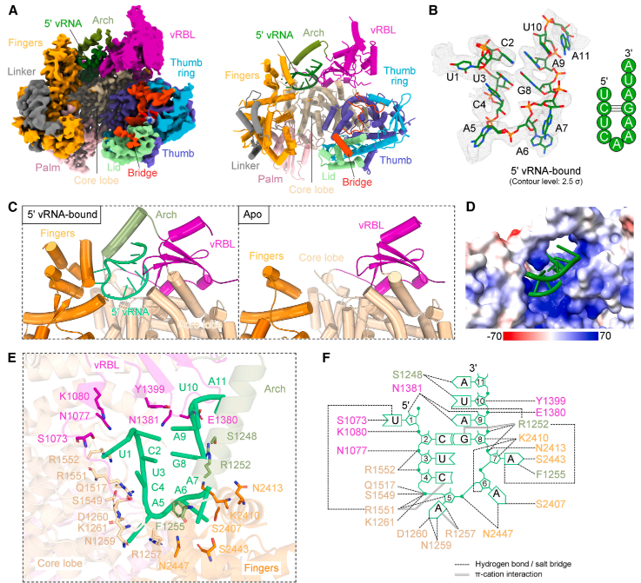
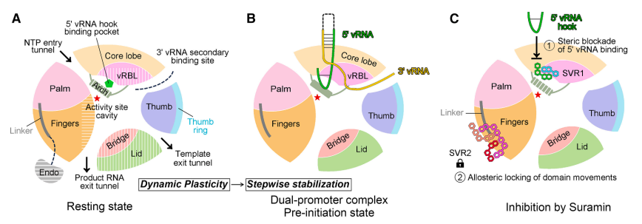
病毒RNA聚合酶如何准确识别基因组两端的启动子,并将这一识别事件转化为能够进行RNA合成的活化状态,是理解CCHFV复制机制的关键问题之一。结构分析显示,CCHFV聚合酶并非在启动子结合后立即进入完全稳定的活化状态,而是经历了一个由动态状态向预激活状态,再向稳定预起始复合物逐步转变的构象成熟过程。在无RNA结合的状态下,L蛋白的部分功能区域具有较高的构象柔性。当5′ vRNA启动子的特征性“钩状”(hook)结构结合至聚合酶后,vRNA-binding loop(vRBL)、fingers和arch等多个区域逐渐变得有序,并形成更加有利于后续RNA招募的预激活构象。值得注意的是,此时聚合酶尚未形成完全稳定的预起始复合物。这提示,5′端启动子识别可能构成CCHFV RNA合成启动过程中的第一道结构性调控步骤。
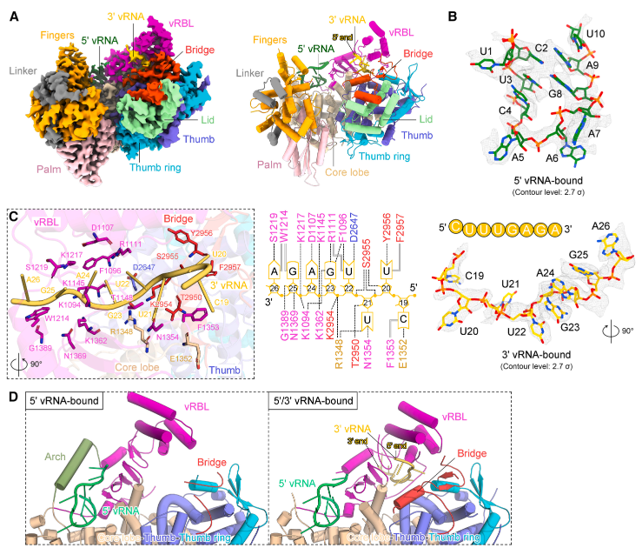
随着3′ vRNA模板进一步结合,聚合酶发生更加广泛的结构稳定和局部重排。3′ vRNA首先进入位于催化中心之外的次级结合位点,并通过与vRBL、bridge等结构区域形成广泛相互作用,进一步稳定聚合酶整体构象。与此同时,部分此前具有较高柔性的区域逐渐有序化,最终形成更加紧凑、稳定的5′/3′双启动子预起始复合物。基于这些结构状态,研究团队提出了CCHFV聚合酶逐步启动的结构模型,即经历:无配体动态状态 → 5′启动子识别与预激活 → 3′模板招募 → 稳定的5′/3′双启动子预起始复合物。这一发现为理解CCHFV聚合酶如何协调识别病毒基因组两端的启动子,以及病毒RNA合成如何受到多步骤结构调控提供了新的机制框架。
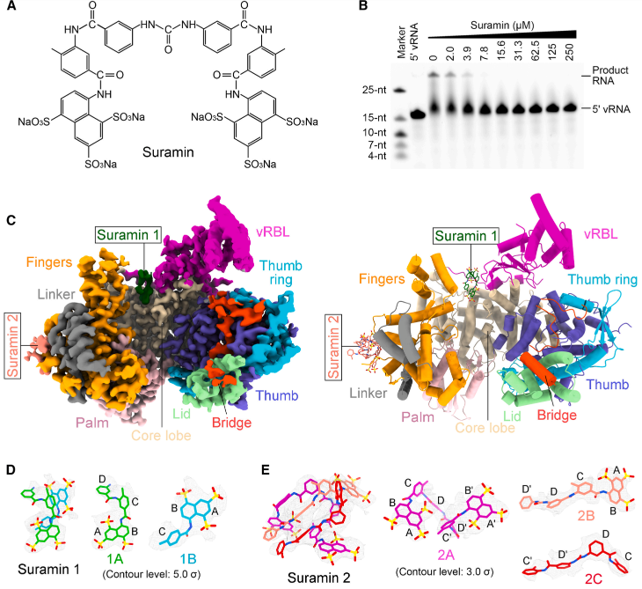
在解析CCHFV聚合酶启动机制的基础上,研究团队进一步探索了针对这一病毒复制机器的药物干预机制。体外酶活性实验表明,广谱抗病毒分子“苏拉明(Suramin)”能够有效地抑制CCHFV L蛋白的RNA聚合酶活性。冷冻电镜结构显示,苏拉明并非通过单一结合位点发挥作用,而是在L蛋白上形成两个空间分离的结合位点,从而实现对聚合酶的双重抑制。第一个位点(Site 1)位于5′ vRNA启动子结合区域。苏拉明带有多个负电荷基团,其整体电化学特征可以在一定程度上模拟RNA磷酸骨架。在该位点,苏拉明可占据5′ vRNA的结合区域,通过空间和电荷维度的竞争削弱 5′启动子与聚合酶之间的相互作用,进而阻断启动子识别及后续的聚合酶启动。第二个位点(Site 2)位于linker–fingers界面。在这一位点,多个苏拉明分子形成特有的聚集,并诱导周围区域发生局部结构稳定和构象重塑。由于fingers区域的构象动态与RNA模板转运以及聚合酶催化循环密切相关,苏拉明对该区域的结合可能通过限制聚合酶关键区域所需的构象可塑性,对其RNA合成活性施加额外的变构抑制。
基于此,研究提出了一种“阻断启动子识别+限制构象动态”的双位点抑制模式:苏拉明一方面通过竞争性占据5′ vRNA结合区域,阻断病毒启动子识别;另一方面通过结合linker–fingers界面并限制结构域构象可塑性,实现对聚合酶延伸过程的变构抑制。这一发现不仅为理解苏拉明抑制CCHFV聚合酶的分子机制提供了新的结构依据,也提示除了传统的催化中心和RNA结合口袋外,聚合酶上参与构象调控的远端界面同样可能成为抗病毒小分子药物设计的重要靶点。
总结与展望
近期,多项冷冻电镜研究相继解析了CCHFV聚合酶在不同功能状态下的结构,并从启动子识别、RNA延伸以及核苷类似物和内切酶抑制剂的作用机制等多个维度,奠定了对这一超大分子RNA复制机器的结构与机制认识。
本研究在解析CCHFV聚合酶结构的同时,通过对多个功能状态的结构比较,将分散的结构快照串联为一条连续的机制路径,系统揭示了CCHFV RNA合成启动过程中由动态无序、预激活到稳定预起始状态的逐步构象成熟过程。与此同时,本研究进一步将聚合酶的构象动态与药物抑制联系起来。苏拉明不仅能够竞争性干扰5′ vRNA启动子识别,还可通过结合远端linker–fingers界面限制关键区域的构象变化,这表明维持聚合酶正常功能所必需的动态平衡本身,也可以成为小分子干预的靶点。
综上所述,本研究从“聚合酶如何被逐步启动”和“聚合酶如何被远端抑制”两个层面拓展了CCHFV聚合酶的结构机制研究:前者揭示了RNA启动过程中的逐步构象成熟,后者则展示了针对聚合酶构象动态进行干预的可能性。两方面发现相互呼应,为进一步理解CCHFV RNA复制机器的动态调控机制,以及开展新型抗病毒抑制剂的理性设计和结构优化提供了全新的研究思路。
深圳湾实验室传染病研究所特聘研究员马军为本文通讯作者,助理研究员杨侃侃、客座研究生吴海强和刘勋碧为共同第一作者。本研究冷冻电镜数据采集工作在深圳医学科学院(SMART)结构生物学实验平台完成,生物层干涉(BLI)实验在SMART生物技术中心样品制备与分析平台完成。项目由深圳湾实验室启动基金资助。
文章全文链接:
https://www.cell.com/cell-reports/fulltext/S2211-1247(26)01023-5
文章来源 | 马军课题组